Výměnná Na+/K+ ATPáza, Na+/K+-exchanging ATPase, Sodíková pumpa
EC 3.6.3.9 (původně EC 3.6.1.37 Na+K+-ATPáza)
Sodíková pumpa je membránový proteinový komplex většiny buněk eukaryotů. Využitím energie intracelulární hydrolýzy ATP reguluje transport iontů přes membránu s hlavními efekty na objem buňky, koncentraci volného kalciového kationu a membránový potenciál.
Hlavní funkcí je přenos tří sodných kationů z nitra buňky a dvou draselných kationů do buňky se vznikem elektrochemického gradientu na membráně, který je rozhodující pro transport metabolitů a nutričních komponent (glukóza, aminokyseliny, kalcium, fosfáty, chloridy) a pro udržování objemu buněk a akčních potenciálů. Pro činnost Na,K-ATPázy je důležitá přítomnost hořečnatých iontů. Přímo se sodíkovou pumpou je spojen spřažený transport sodíkových a kalciových iontů. Při inhibici sodíkové pumpy relativně převáží koncentrace sodíkových iontů v ICT s následující výměnou kalciových a sodíkových kationů s výsledným zvýšením intracelulární koncentrace kalcia a ovlivněním kontraktility myokardu nebo cév.
|
|
|
|
|
|
Sodíková pumpa například moduluje srdeční
kontraktilitu, řízení hospodaření sodíkem v ledvině, ovlivňuje
kontraktilitu cév, zprostředkovává uvolnění neurotransmiterů a ovlivnění jejich
funkce.
|
|
|
|
|
|
Struktura sodíkové pumpy
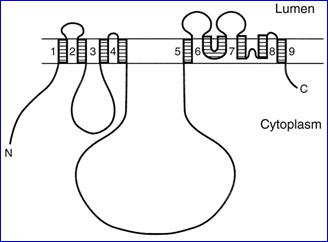
Strukturálně je sodíková pumpa složena ze čtyř (šesti) podjednotek - dvě sousedící podjednotky alfa orientované kolmo k membráně (m.h. 112 kDa), dvě podjednotky beta (m.h. 55 kDa) nasedající na alfa podjednotky z "membránové" strany a předpokládá se i existence dvou malých gama podjednotek v místě mezi membránou a beta podjednotkou (Rose, 1994). Zatímco alfa podjednotka obsahuje receptory pro stimulační a inhibiční ligandy, beta podjednotka slouží ke stabilizaci polohy alfa podjednotky v buněčné membráně a k zajištění bezchybné funkce celého enzymového komplexu. Funkce gama podjednotky není zatím zcela známa.
Funkce sodíkové pumpy
Enzym Na+-K+ ATPáza se vyskytuje ve dvou konformacích, což je výsledkem interakce enzymu s ionty Na+ a K+. Fosforylace enzymu, kdy se přenese terminální fosfátová skupina ATP na karboxylovou skupinu aspartylového zbytku enzymu, vede k dalším dvěma konformacím. Existuje tedy
- fosforylovaný enzym s vysokým obsahem energie v interakci s Na+ (E1~P, přenáší Na+ z nitra buňky ven),
- fosforylovaný enzym s nízkým obsahem energie (E2–P) se sníženou afinitou k Na+ a vyšší afinitou ke K+,
- defosforylovaný enzym (E1) v interakci s K+ (přenáší K+ z vnějšího prostředí do nitra buňky),
- defosforylovaný enzym (E1) se sníženou afinitou ke K+ a zvýšenou afinitou k Na+.
Vlastní pumpa pak funguje následujícím sledem kroků:
- Enzym v interakci s Na+ vykazuje snazší fosforylaci za spotřeby ATP.
- Vzniklá vysokoenergetická forma fosforylovaného enzymu (E1~P) mění konformaci tak, že přenese Na+ přes buněčnou membránu.
- Dojde ke změně enzymu na nízkoeneregetickou fosforylovanou formu enzymu (E2–P).
- Nízkoenergetická fosforylovaná forma enzymu uvolní Na+ a dojde k interakci s K+.
- Interakce s K+ působí defosforylaci enzymu se změnou konformace v tom smyslu, že se přenese K+ z vnějšího prostředí do nitra buňky, uvolněný fosfát zůstává intracelulárně.
- Defosforylovaná forma enzymu má nižší afinitu ke K+ a snáze interaguje s Na+ a cyklus se opakuje.
Vlastnosti podjednotek sodíkové pumpy
|
|
alfa |
beta |
gama |
|
chemická charakteristika |
polypeptid
procházející membránu vícenásobně (10x) |
transmembránový
polypeptid, jeden průchod membránou, glykosylovaný |
hydrofobní
polypeptid, schopen vazby s ouabainem |
|
molekulová hmotnost (g/mol) |
112000 |
40000 – 60000
(podle glykosylace) |
8000 – 14000 |
|
funkce |
katalytická a
transportní podjednotka, vazba ATP, kationtů, ouabainu, digoxinu a dalších
kardiotonických steroidů |
nutná pro
normální enzymovou aktivitu, role při okluzi K+, moduluje afinitu
Na+ a K+, působí jako chaperon, stabilizuje
alfa-podjednotku |
modifikuje
potenciálové vztahy, stabilizuje konfiguraci v poloze E1, modifikuje
funkci jiných iontových kanálů |
|
izoformy (počet aminokyselin – krysa) |
alfa 1 (1024),
alfa 2 (1021), alfa 3 (1014), alfa 4 (1028) |
beta 1 (304),
beta 2 (290), beta 3 (279) |
|
Příklady endogenních inhibitorů sodíkové pumpy
|
Látka |
Původ, zdroj
izolace |
|
Ouabain isomer |
lidský
hypothalamus |
|
Digoxin-like
factors (substances) |
lidská plazma,
lidská a krysí moč |
|
Neoconvalloside |
krysí moč |
|
Periflogenin |
krysí moč |
|
Adrexin C |
hovězí nadledviny
(m.h. pod 350 g/mol) |
|
Uroxin |
prasečí moč (m.h.
620 g/mol) |
|
19-norbufalin |
čočka pacientů
s kataraktou |
|
Marinobufagenin |
lidská moč a
plazma |
|
Marinobufotoxin |
buňky Y-1
nadledvin |
|
Telecinobufagin |
lidská plazma |
|
Proscillaridin A
(Inhibitor A?) |
hovězí nadledviny |
|
3beta,14alfa,20:21-bufadienolid |
lidská placenta
(m.h. 370 g/mol) |
|
Neidentifikovaná
substance |
lidský
peritoneální dialyzát (působí na alfa-1 izoformu, ouabain resistentní) |
|
Isoflavonoid
equol |
lidská plazma a
moč, současně inhibuje Na:K:2Cl kontransportér |
Poznámky ke struktuře a funkci sodíkové pumpy
Alfa podjednotka může mít různou afinitu pro kardenolidy u různých živočišných druhů a různých izoforem. U alfa podjednotky s vyšší afinitou se rozlišují izoformy alfa 2 a alfa 3, rozdíl v afinitě může mít klinický význam například při nedostatečné odpovědi na léčbu digoxinem. Podjednotka alfa obsahuje jediný známý receptor pro kardenolidy (srdeční glykosidy rostlinného původu z rodů Digitalis - digoxin, digitoxin, a Strophantus - strofantin, ouabain). Ouabain může pocházet také z afrického stromu Ouabaio, dalším druhem poskytujícím kardenolidy je Acocanthera (Rose, 1994). Kardenolidy mají steroidní sketet z 23 uhlíků s laktonovým pětičlenným cyklem na C17 a jedním nebo více sacharidovými zbytky na C3 (digitoxóza u digoxinu, rhamnóza u ouabainu). Struktura kardenolidů je důležitá pro vazbu na receptor podjednotky alfa: řada hydrofobních vazeb a vodíkových můstků je se steroidním skeletem, vodíkové můstky jsou se sacharidovou složkou i s laktonovým cyklem. Po kontaktu s receptorem dojde k vazbě, ligand (srdeční glykosid) je "zabalen" epitopy receptoru a výsledkem je inhibice enzymové aktivity Na,K-ATPázového komplexu.
Účinek digoxinu ovlivňují kromě vazby na receptor také změny jeho vylučování a metabolismu. Renální eliminaci ovlivňují některé léky inhibicí P-glykoproteinu, jehož expresi zajišťuje gén MDR1. Tento způsob inhibice vylučování digoxinu (a také např. vinblastinu) způsobují chinidin, verapamil a cyklofosfamid. Biotransformace digoxinu situaci dále komplikuje nejen zkříženou reaktivitou některých metabolitů s imunochemickým stanovením digoxinu, ale část z nich působí inhibicí sodíkové pumpy.
Význam sodíkové pumpy pro životní funkce eukarytických buněk a všeobecná rozšíření receptorů pro srdeční glykosidy na alfa-podjednotce Na,K-ATPázy prakticky vylučuje jejich existenci pouze pro xenobiotika. Lze tedy předpokládat z fylogenetického hlediska existenci látek podobných srdečním glykosidům, které specifickou vazbou na alfa podjednotku inhibují funkci sodíkové pumpy (Rose, 1994).
Literatura
Xie, Y. et al: Only the first and the last hydrophobic segments in the COOH-terminal third of Na,K-ATPase alpha subunit initiate and halt, respectively, membrane translocation of the newly synthetized polypeptide. J. Biol. Chem., 271, 1996, č. 5, s. 2563 – 2573.
Další informace:
Antonín Jabor