Komplement
- diagnostika a význam pro kliniku
1. úvod
2. fylogeneze a ontogeneze komplementu
3. definice a terminologie
4. mechanismus funkce komplementu
5. metody stanovení aktivity a koncentrace
6. klinické využití
1. Úvod
Pod názvem komplement si dnes
představujeme zhruba 20 - 30 glykoproteinů, které se nacházejí
v plasmě obratlovců od ryb až po
savce ve formě prekurzorů a kofaktorů enzymů, kontrolních proteinů i
efektorových molekul (tab. 1). Aktivity komplementu zasahují do mnoha oblastí
imunitního systému, které zahrnují vyvolání a regulaci zánětu včetně reakce
okamžité přecitlivělosti, opsonizaci cizorodého materiálu pro fagocytózu a
zprostředkování přímé cytotoxicity namířené proti buňkám a mikroorganismům.
2. Fylogeneze a ontogeneze komplementového systému
Poprvé byly aktivity
komplementu spočívající v destrukci bakterií čerstvým sérem popsány před
více než 100 lety. Zjistilo se, že tyto antibakteriální aktivity jsou
zprostředkovány jednak tepelně stabilními faktory odolnými zahřání na 56 oC
(inaktivaci), které představují protilátky, jednak tepelně labilními faktory,
které v letech 1898 - 1899 nazval Ehrlich komplementem a Buchner alexinem.
Takovéto aktivity byly ovšem popsány částečně i u fylogeneticky nižších
organismů, jako jsou např. někteří členovci, avšak podrobnější fylogenetická
analýza komplementového systému u těchto nižších živočichů není dosud
k dispozici (např. Dodds A.W. and Day A.J. 1993 a 1996). Podobně je známo,
že hemolytická aktivita komplementu u novorozenců a malých dětí nedosahuje často
100% aktivity dospělých jedinců, takže je zřejmé, že celý systém komplementu
podléhá také ontogenezi, která, ač začíná již v časné embryogenezi a při porodu
koncentrace jednotlivých složek komplementového systému plodu dosahují téměř
hodnot mateřského séra, není ukončena porodem.
Většina komplementu
přítomného v plasmě savců je syntetizována v játrech. O významu
komplementu v imunitním systému savců svědčí to, že jeho jednotlivé složky
mohou být syntetizovány v případě potřeby lokálně také v mnoha
dalších tkáních a nahradit tak složky plasmatického komplementu, které se na
tato místa nemohou dostat penetrací buď kvůli své velikosti nebo kvůli
speciální ochraně tkáně vůči penetraci plasmatických látek (tab.2).
O důležitosti
komplementového systému v udržování homeostázy organismu svědčí i jeho vztahy s
dalšími funkčními systémy, např. vitronektinem, somatomedinem 3 a molekulami
systému srážení krve (viz např. Šterzl, 1993, Ferenčík, 1989). Tyto vztahy jsou
nejen funkční (tak např. plasmin aktivuje C1 a tím i klasickou cestu aktivace
komplementového systému, C1-INH patří mezi serpiny, tj. serinové proteinázové
inhibitory, stejně jako antitrombin III, a1-antitrypsin,
a1-antichymotrypsin,
a2-antiplasmin
aj.), ale i homologní (např. tzv. krátký opakující se úsek - SCR, je součástí
nejen C1r, C1s, C2, B, H, C4bp, CR1, CR2, C6, C7, MCP a DAF, ale i selektinů
obecně, IL2-receptoru, faktoru XIII a b2-glykoproteinu
I).
Proteiny podobné především
komplementovým regulačním proteinům produkuje také řada mikroorganismů, zřejmě
aby je využívala k eliminaci pro ně destruktivního působení komplementu. Mezi
takovéto proteiny patří např. tzv. virokiny. Jedním z virokinů je např. VCP
(vaccinia control protein), který vykazuje vysokou sekvenční podobnost s prvními čtyřmi SCR N-terminálního konce
C4bp a který je velice účinný v inhibici komplementové kaskády na úrovni
aktivace C4 a C3.
3. Definice a terminologie

 Pro popis komplementového systému platí řada
pravidel. Např. složky klasické cesty jsou označovány velkými písmeny C a
číslem složky (C1, C2 atd.). Číslo složky označuje také pořadí, v jakém se
tyto složky postupně zapojují do aktivační kaskády vyjma C4, která se zapojuje
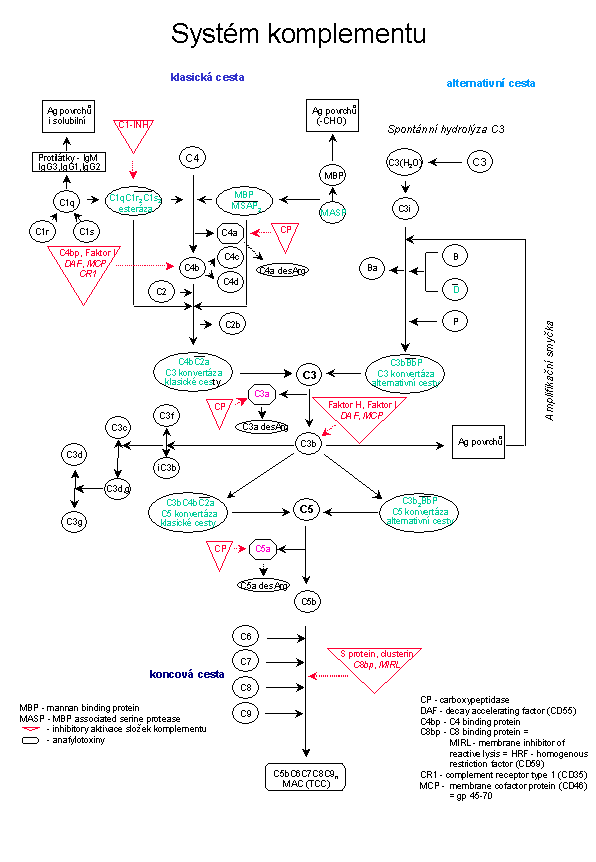
před C2 a C3 (viz obr. 1). Komponenty alternativní cesty a jejich regulační
proteiny jsou označovány velkými písmeny (např. B, D, H). Regulační proteiny
klasické cesty bývají označovány zkratkami jejich funkce (např. C4bp, MIRL, DAF
apod.). Složky komplementu nebo komplexy složek komplementu s enzymatickou
aktivitou bývají označovány čárkou v horním indexu (např. C14b). Fragmenty
složek komplementu jsou označovány
příponou malého písmena (např. C4a) a složky komplementu, které ztratily svou
aktivitu předponou malého i (např.
iC3b). Receptory pro komplement jsou označovány příponou R a číslem (např. CR1),
event. číslem CD znaku (např. CR1 = CD35).
4. Mechanismus funkce
Aktivity komplementového
systému byly nejprve měřeny a kvantifikovány
pomocí hemolytických testů za použití ovčích erytrocytů (E)
senzibilizovaných králičí anti-ovčí protilátkou nazývanou amboceptor (A) a
zdrojem komplementu (C), kterým bylo v experimentu nejčastěji morčecí
sérum. Cesta aktivace komplementu na komplexu antigen-protilátka, která probíhá
také ve výše popsaném reakčním systému,
byla označena jako klasická cesta aktivace (CP, classical pathway). Je
prokázáno, že stejná cesta (sekvence) aktivace může být vyvolána i na jiných
strukturách, než jsou komplexy
antigen-protilátka (viz. obr. 1, tab. 3).
Komplementový systém však
může být aktivován také jiným způsobem, který byl objeven již ve 40. letech
Pillemerem. Byl nazván alternativní cestou aktivace (AP, alternative pathway).
Schéma aktivace komplementového systému je uvedeno rovněž na obr. 1.
5. Metody stanovení
koncentrace a aktivity komplementu
Klasické hemolytické testy
stanovující celkovou aktivitu komplementového systému aktivovaného klasickou
nebo alternativní cestou v jednotkách CH50 (event. CH100, podle toho
stanovuje-li se 50% nebo 100% hemolýza erytrocytů v reakčním systému) nebo
AH50 (event. AH100), jsou dodnes považovány za nejlepší screeningové testy při
podezření na deficity některé ze složek komplementu, nebo když je podezření na
vysoké zapojení komplementového systému do probíhajícího patofysiologického
procesu (např. SLE). Tyto testy jsou však příliš hrubé a přes svou materiální
nenáročnost vysoce náročné na provedení počínaje odběrem krve a získáním séra
na to, aby mohly postihnout jemnější změny v celkové aktivitě komplementového
systému, resp. aktivitě nebo koncentraci jeho jednotlivých složek. Normální referenční
hodnoty udávané laboratořemi závisí u metod stanovujících aktivitu komplementu
hemolytickými testy na tom, jak je v té či oné laboratoři definován reakční
systém. Jako velmi orientační mohou být pro stanovení celkové aktivity
komplementového systému klasickou i alternativní cestou použity testy
stanovující tyto aktivity metodou jednoduché radiální imunodifúze, kde je
v agaróze zakomponován příslušný erytrocytární hemolytický systém. Tyto
testy jsou u nás komerčně dostupné např. od firmy Binding Site a dodávány
firmou Immunotech. Komerčně je dnes dostupná také metoda stanovující aktivitu
komplementového systému pomocí LIA (Liposome Immunoassay, WAKO). Při
interpretaci výsledků těchto testů si musíme uvědomit, že těmito testy měříme v
séru jen “zbytkovou” aktivitu komplementu a nedostáváme odpověď na otázku, v
jaké míře je kromě této “zbytkové” aktivity in vivo komplementový systém
aktivován. K tomu je nutné znát koncentrace aktivovaných štěpů a meziproduktů
vznikajících při aktivaci komplementové kaskády, které se prokazují většinou v
plasmě. Patří mezi ně především iC3b, C3a, C4a, Bb, C5a, SC5b-9. Koncentraci
těchto produktů aktivace komplementového systému lze již dnes měřit komerčně
dostupnými ELISA testy (vyrábí např. firma QUIDEL a u nás dodává firma
Biomedica). Finančně je ovšem tato diagnostika zatím velmi náročná, a proto se
v běžné praxi neprovádí. Stejně tak ELISA stanovení celkové aktivity
komplementového systému, které je dnes možné a principiálně je jistě
standardnější než klasické hemolytické
testy (vyrábí např. firma INCSTAR, dodává Biomedica nebo Biovendor), není zatím
nikde ve světě běžně prováděno především kvůli ceně diagnostik. Doporučované
schéma analýzy komplementového systému je uvedeno na obr. 2.
Koncentraci jednotlivých
složek komplementového systému lze stanovovat imunochemickými metodami jako nefelometrie, turbidimetrie, jednoduchá
radiální imunodifúze a ELISA. Volba metody závisí na koncentraci složky v
analyzovaném systému. Mohou být použity také funkční hemolytické testy, které
jsou založeny na tom, že se připraví hemolytický systém, který je deficitní
právě pouze v analyzované složce komplementu. Když se pak k tomuto systému
přidá analyzovaný vzorek, závisí stupeň hemolýzy na množství analyzované složky
komplementu v tomto vzorku. Takovéto systémy jsou většinou připravovány v
příslušných specializovaných laboratořích a v ČR je takováto analýza zatím
nedostupná. Imunochemické stanovení většiny složek komplementu je možné pomocí
komerčních souprav dodávaných na náš trh např. firmou Immunotech od firmy
Binding Site. U nejčastěji a nejfrekventněji prováděných imunochemických
stanovení koncentrace C3 a C4 složky komplementu musíme mít na zřeteli, že
pomocí těchto metod nejsme schopni při použití běžných antisér a běžné
nefelometrie, turbidimetrie nebo jednoduché radiální imunodifúze rozlišit
přítomnost aktivních a inaktivních složek (např. C3 a C3c) v analyzovaném vzorku, a tak objektivně
posoudit stupeň aktivace komplementu. K tomu je zapotřebí použít
imunoelektroforetických metod (viz níže).
Aktivní forma C1r vytváří
rychle komplexy s C1-INH, a neumožňuje tak reagovat C1r s antisérem. Proto je obtížné diagnostikovat
a správně interpretovat nízké koncentrace C1r pomocí imunochemických metod.
Zcela nevhodné jsou imunochemické metody pro diagnostiku deficience C8. Pro C8
existují tři geny, které kódují tři peptidy (a, b,g). C8 je nefunkční, nejsou-li k dispozici všechny tři
peptidy. Deficit bývá v produkci pouze jednoho z nich, ale imunochemické metody
tyto tři peptidy nerozlišují. Proto pro stanovení deficitu C8 jsou použitelné
pouze funkční testy.
Při podezření na deficit C4
by měla být provedena analýza haplotypů C4 pomocí imunoelektoforetických metod,
neboť C4 je komplex produktů 4 rozdílných alel: dvou C4A a dvou C4B. Imunoelektroforetické
metody mohou být také využity pro screeningovou analýzu aktivace C3 složky komplementu,
neboť elektroforetická pohyblivost nativní C3 a štěpu C3c, které mají shodné
imunochemické vlastnosti, se liší. Na štěpení C3 v normálním čerstvém lidském
séru je založen také imunochemický průkaz C3-NeF v analyzovaném vzorku, který
je u nás možno provádět např. pomocí souprav firmy Binding-Site. Diagnostika
deficitů regulačních sérových proteinů
C1-INH, C4bp, faktorů H a I se
kromě analýzy C1-INH zatím u nás běžně neprovádí. Měla by však být prováděna
tehdy, jsou-li výrazněji sníženy koncentrace složek komplementu, jejichž
štěpení tyto proteiny regulují. Tak při abnormálně nízkých koncentracích C3,
nekorespondujících s koncentracemi ostatních složek komplementu, by měly být
zkoumány faktory H a I, event. C4bp, pokud toto snížení koncentrace nelze
vysvětlit jinak. Jsou-li sníženy koncentrace C4 a C2 více než C1, pak lze
očekávat defekt v C1-INH. Ten může být způsoben buď fyzickou nebo funkční
nepřítomností C1-INH v analyzovaném vzorku. Oba defekty se u nás nejčastěji
diagnostikují pomocí souprav firmy Binding-Site. Stanovení koncentrace C1-INH
je založeno na běžné metodě jednoduché radiální imunodifúze za použití
anti-C1-INH antiséra. Funkční stanovení C1-INH je založeno na stanovení C1r
metodou jednoduché radiální imunodifúze po inkubaci analyzovaného vzorku s
nativním sérem a s tepelně-agregovaným
IgG. Po inkubaci s tepelně agregovaným IgG dojde ke spuštění kaskády
komplementu klasickou cestou a pokud je C1-INH funkční, měl by se vyvazovat na
aktivovaný C1r a tím snižovat jeho koncentraci v analytickém systému.
Snížení koncentrací C1-INH, ale také
C1q a ostatních složek komplementu mohou však způsobovat také autoprotilátky
namířené proti těmto složkám komplementu,
které se u některých pacientů vytvářejí. Mezi takovéto autoprotilátky
bývají zařazovány také C4NeF a C3NeF, které inaktivují C3-konvertázy klasické i
alternativní cesty (viz. obr.1)
CD definice komplementových
receptorů, dostupnost antisér proti těmto receptorům i průtokových cytometrů
umožňuje dnes analýzu buněk na expresi komplementových receptorů, jejichž
nevyvážená přítomnost může hrát významnou úlohu v mnoha imunopatologických
procesech, v nichž je komplement aktivován (viz. obr.1, tab. 4).
6. Klinické využití
V klinické praxi bývá
prováděna analýza komplementového systému z několika důvodů:
a. podezření na deficit některé ze složek
komplementového systému nebo jeho regulátorů včetně receptorů, který může mít
asociaci s některými patofysiologickými stavy, nebo dokonce vytvářet
podmínky pro jejich vznik. Tyto defekty však nejsou až na vyjímky příliš časté
(viz tab. 5).
b. posouzení aktivity onemocnění, u nichž se předpokládá
zapojení komplementového systému do jejich patogeneze. Kromě stanovení aktivit
CH50 a AH50 by zde měla být prováděna především vyšetření stanovující
aktivované složky komplementu v plasmě (viz obr. 2). Stanovování pouhých
koncentrací složek komplementu (zvláště C3) běžnými imunochemickými
precipitačními technikami může být někdy zavádějící. Takovýmito onemocněními
jsou např. autoimunitní onemocnění hlavně systémového charakteru, těžší
infekční onemocnění, nádorová onemocnění, stavy po transplantaci orgánů apod.
c. fenotypizace jedince za účelem stanovení jeho
genetické predispozice k určitým chorobám. V této souvislosti se
provádí především analýza složek komplementu C2, faktoru B a C4, jejichž geny
leží na krátkém raménku 6. chromozómu v oblasti mezi lokusy pro HLA
antigeny 2. a 1. třídy. Tato oblast bývá označována jako oblast HLA 3. Polymorfismus komplementových proteinů je
uveden v tab. 6.
Literatura
Complement. In Current
Protocols in Immunology. Current protocols on CD-ROM, Wiley, 1998
Dodds A.W., Day A.J.: The phylogeny
and evolution of the complement system. Immunol. and Med., 20, 1993, 39-88
Dodds A.W., Day A.J.:
Complement related proteins in invertrebrates. In New directions in
invertebrate immunology (Sönerhall
K., Iwanaga S., Vasta G.R. edit.) ISBN 0-9625505-9-0, SOS Publ., Fair Haven,
NJ, 1996, pp. 303-341
Ferenčík M.: Komplementový
systém. Imunochémia, Alfa, Bratislava, 1989, str. 298-345
Giclas P,C., Rabson A.R.,
Holers V.M., Moulds J.M., Wener M.H., Gorevic P.D., Galanakis D., Finn A.F.
Manual of Clinical Laboratory Immunology, fifth edition, Rose N.R., deMacario
E.C., Folds J.D., Lane H.C., Nakamura R.M. editors, ASM Press, Washington,
1997, pp. 179-226
Lambris J.D., Mavroidis M.,
Sunyer J.O.: Phylogeny of thirs component of complement, C3. In New Aspects of
Complement Structure and Function (Erdei A. edit.), R.G. Landes Company, 1994,
pp. 15-34
Lochman I.: Vzorové SOP pro
CH50 a AH50 v systému SLP. Stapro, Pardubice, 1998
Male D., Cooke A., Owen M.,
Trowsdale J., Champion B.: Complement in Advanced Immunology, Mosby, London et
al., 1996, 13.1 - 13.16
Mollnes T.E., Harboe M.:
Neoepitope expression during complement activation - A model for detecting
antigenic changes in proteins and activation of cascades. The Immunologist 1/2,
1993, 43-49
Morgan B.P., Gasque P.:
Extrahepatic complement biosynthesis: where, when and why ? Clin. Exp. Immunol.
107, 1997, 1-7
Müller-Eberhard H.J., Hoffmann G.:
Complement in Methods i Immunology and
Immunochemistry, vol. IV, (Williams C.A. and Chase M.W. edit.), Academic Press, New York - San Fracisco -
London, 1977, pp. 128 - 274
Oppermann M., Höpken
U., Götze
O.: Assessment of complement activation in vivo. Immunopharmacology 24, 1992,
119-134
Reid K.B.M.: The Complement
Systém: A Major Effector Mechanism in Humoral Immunity. The Immunologist, 3,
5/6, 1995, 206-211
Staršia Z.: Klinický význam
komplementu. Novinky v medicíně 39, Avicenum, Praha, 1987, 53-95
Šterzl J.: Vývoj a indukce
imunitní odpovědi, Academia, Praha, 1988, str. 131-137
Šterzl J.: Imunitní systém a
jeho fysiologické funkce, ČIS, Praha, 1993, str. 140-144
Thomas L.: The complement
system. In Clinical Laboratory Diagnostics, First Edition, TH-Books
Verlagsgesellschaft mbH, Frankfurt/Main, 1998, s. 794-806
Yamamoto S., Kubotsu K.,
Kida M., Kondo K., Matsuura S., Uchiyama S., Yonekawa O., Kanno T.: Automated
homogenous liposome-based assay systém for total complement activity.
Clin.Chem. 41, 1995, 286-590
Tab. 1: Složky komplementového
systému člověka
|
Označení složky |
koncentrace v séru (mg/ml) |
molekulová váha |
elektroforetická pohyblivost |
zapojení do cesty |
enzymatická aktivita |
|
C1q |
83-125 |
460000 |
g-2 |
CP |
ne |
|
C1r |
18,7-49,3 |
92000 |
b |
CP |
ano |
|
C1s |
10,2-51,8 |
86000 |
a |
CP |
ano |
|
C2 |
25 |
117000 |
b-1 |
CP |
ano |
|
C4 |
150-450 |
206000 |
b-1 |
CP |
ne |
|
C3 |
830-1770 |
185000 |
b-2 |
CP/AP |
ne |
|
C3b |
stopy |
170000 |
b-1 |
AP |
ne |
|
C5 |
55-113 |
180000 |
b-1 |
TP |
ne |
|
C6 |
28-60 |
95000 |
b-2 |
TP |
předpokládá se |
|
C7 |
27-74 |
110000 |
b-2 |
TP |
ne |
|
C8 |
49-106 |
163000 |
b-2 |
TP |
ne |
|
C9 |
33-95 |
79000 |
b-2 |
TP |
ne |
|
D |
2 |
25000 |
a |
AP |
ano |
|
B |
128-278 |
93000 |
b |
AP |
ano |
|
P |
25 |
184000 |
g-2 |
AP |
ne |
|
MBP |
0.1 - 5.0 |
540000 |
|
LP |
ne |
|
MASP |
|
94000 |
|
LP |
ano |
|
C1-INH |
80-195 |
90000 |
g-2 |
Ctrl(CP) |
ne |
|
I |
18-62 |
100000 |
b-2 |
Ctrl(CP/AP) |
ano |
|
H |
331-791 |
150000 |
b-1 |
Ctrl(AP) |
ne |
|
C4bp |
250 |
550000 |
b |
Ctrl(CP) |
ne |
|
CFI |
<10 |
310000 |
a-1 |
Ctrl(TP) |
ano |
|
S |
200 |
80000 |
a |
Ctrl(TP) |
ne |
|
C3a |
0,6 |
11000 |
katodická |
štěp(TP) |
ne |
|
C4a |
1,5 |
12000 |
katodická |
štěp(CP) |
ne |
|
C4d |
0-9,7 |
|
a |
štěp (CP) |
ne |
|
C5a |
0,01 |
11000 |
katodická |
štěp(TP) |
ne |
|
Bb |
0-8,8 |
60000 |
g |
štěp(AP) |
ano |
|
SC5b-9 |
0,6 |
1000000 |
nedefinována |
MAC/TCC(TP) |
ne |
CP - klasická cesta, AP -
alternativní cesta, LP - lektinová cesta, TP - koncová cesta, Ctrl - kontrolní
faktor, MAC/TCC komplex napadající membrány/koncový komplex komplementu, MBP -
protein vázající manan, MASP - serinová proteáza pro MBP. Většina složek
komplementu, které mají v tabulce vyznačenu enzymatickou aktivitu, se
nachází v oběhu jako prekurzory enzymů, pouze faktory D, I a MASP jsou
již v oběhu enzymaticky aktivní.
Fysiologické koncentrace jednotlivých složek komplementového systému udávané
různými autory v literatuře se často dost značně liší a hodnoty v tabulce nutno
brát jen jako orientační.
Zpracováno podle P.Giglase,
Current Protocols in Immunology a další literatury
Tab. 2: Buňky
a tkáně, u nichž byla zatím prokázána schopnost syntetizovat komplement a jeho
receptory
|
Cesta
aktivace |
klasická |
alternativní |
koncová |
receptory |
|
játra:
hepatocyty |
C1r/s,
C4, C2, C1-INH, C4bp |
C3,
B, H, I |
C4-C9 |
C1qR,
C5aR, C3aR |
|
buňky
krve: T-lymfocyty |
|
C3,
P |
C5 |
CR1,
CR2, CR4, C3aR |
|
B-lymfocyty |
|
C3,
H. I |
C5 |
C1qR,
CR1, CR2, CR4 |
|
monocyty |
C1q,
C1r/s, C4, C2, C1-INH, C4bp |
C3,
B, D, P, H, I |
C4-C9 |
C1qR,
CR1, CR3, CR4, C5aR, C3aR |
|
krevní destičky |
C1-INH |
H |
C5-C9 |
C1qR,
CR2, CR4, C5aR, C3aR |
|
neutrofily |
|
C3,
P |
C6,
C7 |
C1qR,
CR1, CR3, CR4, C5aR, C3aR |
|
makrofágy |
C1q,
C1r/s, C4, C2, C1-INH |
C3,
B, D, P, H, I |
C5-C9 |
C1qR,
CR1, CR3, CR4, C5aR, C3aR |
|
fibroblasty |
C1q,
C1r/s, C4, C2, C1-INH |
C3,
B, H |
C5-C9 |
C1qR |
|
endoteliální
buňky |
C1s,
C2, C1-INH |
C3,
B, H. I |
|
C1qR,
CR1, C5aR |
|
epiteliální
buňky |
C1q,
C1r/s, C4, C2, C1-INH |
C3,
B, H |
C5 |
C1qR,
C5aR |
|
plíce:
makrofágy + epiteliální buňky |
C1q,
C4, C2 |
C3,
B, D |
C5 |
C5aR |
|
ledviny,
epiteliální buňky |
C4 |
C3 |
|
C5aR |
|
kůže:
keratinocyty + fibroblasty |
C1-INH |
C3,
B, H |
|
CR1,
CR2 |
|
tenké
střevo: epiteliální buňky |
C4 |
C3,
B |
|
C5aR |
|
kůže,
sval, myoblast |
C1-INH |
C3,
B, D, P, H, I |
|
|
|
tuková
tkáň: adipocyty |
|
C3,
B, D |
|
|
|
synoviální
tkáň |
C1q/r/s |
C3,
B, D, H. I |
C5,
C6, C7, C9 |
CR1 |
|
mozek:
astrocyty |
C1q,
C1r/s, C2, C4, C1-INH |
C3,
B, D, H, I |
C5-C9 |
C1qR,
CR1, CR2, C5aR, C3aR |
|
mikroglia |
C1q,
C4 |
C3 |
|
C1qR,
CR3, CR4, C5aR |
|
pohlavní
trakt |
|
C3 |
|
|
Zpracováno podle Morgana a
Gaquea, 1997
Tab. 3: Příklady substancí,
které aktivují komplement
_________________________________________________________
Aktivátory klasické
cesty
komplexy antigenu s protilátkou
DNA a kyselina polyinositová
komplexy polyanion-polykation
heparin-protamin sulfát
komplexy CRP
některé opouzdřené viry
krystaly urátu sodného
lipid A a bakteriální lipopolysacharidy
kyselina plikatiková
polysacharid jedu mravence
Aktivátory
alternativní cesty
inulín
buněčné stěny kvasinek (zymosan)
Sephadex
endotoxin (bakteriální lipopolysacharid)
králičí erytrocyty
desialylované lidské erytrocyty
faktor kobřího jedu (cobra venom factor)
Aktivátory klasické i
alternativní cesty
agregované imunoglobulíny
membrány buněčných částic (mitochondrií a mikrosomů)
Enzymy plasmy a buněk,
které štěpí komplement
plasmin a kallikrein
aktivovaný Hagemanův faktor XII
elastáza neutrofilů a
cathepsin G
___________________________________________________________.
Zpracováno podle Current
Protocols in Immunology
Tab. 4: Charakteristika vybraných komplementových receptorů
|
Typ receptoru |
specificita pro ligand |
typ buněk a exprese: |
|
qC1qR |
C1q “hlavičky” |
krevní destičky, leukocyty, cévní endothel |
|
C1qRP |
C1q “nožky” |
monocyty, makrofágy, cévní endothel |
|
cC1qR |
C1q “nožky”, SP-A, MBP, SP-D |
leukocyty, krevní destičky, cévní endothel, fibroblasty, alveolární epitel typ II, hladké svaly, mesangium |
|
C5aR (CD88) |
C5a |
eosinofily, neutrofily, monocyty, makrofágy, krevní destičky, žírné buňky, hepatocyty, hladká svalovina cév, broncho-alveolární epitel, cévní endothel, astrocyty |
|
CR1 (CD35) |
C3b > C4b > iC3b |
B-lymfocyty: vysoká erytrocyty: velmi nízká folikul. dendrit. buňky: vysoká podocyty ledvin: vysoká monocyty: vysoká neutrofily a eosinofily: vysoká T-lymfocyty: vysoká makrofágy tkání: nízká |
|
CR2 (CD21) |
C3d oblast iC3b = C3dg = C3d > C3b a gp350 EBV, CD23, interferon-a |
B-lymfocyty: vysoká folik. dendrit. buňky: vysoká epitel. buňky pharyngu: nízká T-lymfocyty: velmi nízká thymocyty: velmi nízká |
|
CR3 (CD11b/CD18) |
klidový CR3: iC3b, b-glukan
a LPS aktivovaný CR3: ICAM-1, fibrinogen, C3dg a L-selectin ? dále Faktor X aj. |
B-lymfocyty (CD5+): vysoká monocyty: vysoká NK buňky: vysoká neutrofily a eosinofily: vysoká T-lymfocyty (CD8+): vysoká makrofágy tkání: nízká |
|
CR4 (CD11c/CD18) |
iC3b > C3b, fibrinogen |
B-lymfocyty: vysoká monocyty: nízká NK-buňky: nízká neutrofily a eosinofily: nízká T-lymfocyty (CD8+): nízká makrofágy tkání: vysoká |
SP-A, SP-D, MBP - kolektiny
= látky, které vážou lektiny (“surfactant proteins” A a D a “mannose-binding
protein”)
zpracováno podle Current
Protocols in Immunology on CD ROM a Manual of Clin.Lab.Immunol.
Mezi další receptory pro
komplement a jeho aktivační produkty, které významně ovlivňují aktivaci a
důsledky aktivace komplementového systému, patří DAF (CD55), MCP (CD46), MIRL
(CD59, HRF, C8bp) a C4aR/C3aR (viz obr.1). DAFa MIRL patří mezi významné
inaktivátory aktivovaného komplementu na membránách erytrocytů, které zabraňují
jejich hemolýze při aktivaci komplementu.
Nepřítomnost CD59, který inhibuje adherenci C9 molekul na komplex
C5bC6C7C8, v membráně erytrocytů je příčinou PNH (paroxysmální noční
hematurie). CD55 i CD59 patří mezi tzv.
glykosylfosfatidylinositol (GPI) - ukotvené proteiny.
Tab. 5: Vrozené defekty komplementového systému
|
protein |
počet dosud dg případů |
patologické důsledky |
|
C1q |
~ 20 |
opakov. infekce, SLE, jiné
imunokomplexové choroby |
|
C1r |
< 10 |
opakov. infekce, SLE, jiné
imunokomplexové choroby |
|
C1s |
< 10 |
opakov. infekce, SLE, jiné
imunokomplexové choroby |
|
C4 |
~ 20 |
opakov. infekce, SLE, jiné
imunokomplexové choroby |
|
C2 |
> 70 |
opakov. infekce, SLE, jiné
imunokomplexové choroby |
|
C3 |
~ 20 |
opakované infekce |
|
C5 |
~ 20 |
SLE, neisseriové infekce.
Leinerův syndrom |
|
C6 |
~ 20 |
neisseriové infekce |
|
C7 |
< 20 |
neisseriové infekce |
|
C8 |
< 20 |
neisseriové infekce, SLE,
scleroderma pigmetosum |
|
C9 |
desítky |
žádné, scleroderma,
purpura, neisseriová meningitida |
|
MBP |
časté |
opakované infekce |
|
P |
~ 10 |
žádné, neisseriové
meningitidy |
|
H |
< 10 |
hemolyticko-uremický
syndrom |
|
C1-INH deficit |
stovky |
hereditární angioedém |
|
C1-INH dysfunkce |
desítky |
hereditární angioedém |
Zpracováno podle Staršia,
1987 a další literatury
Tab. 6: Polymorfismus
komplementových proteinů
|
Protein |
Počet alotypů |
|
C2 |
4 |
|
C4 |
35 |
|
C3 |
20 |
|
C5 |
3 |
|
C6 |
8 |
|
C7 |
3 |
|
C8 |
5 |
|
B |
11 |
|
H |
3 |
|
D |
2 |
|
C4bp |
2 |
Zpracováno podle Staršia, 1987
Ivo
Lochman