Ketogeneze je proces tvorby
ketolátek. Mezi ketolátky patří aceton, 3-hydroxybutyrát a acetoacetát.
Vznikají v
játrech oxidací mastných kyselin. Ketogeneze však není pouze nutný následek
přívodu uvolněných mastných kyselin z lipolýzy tukové tkáně, ale jde o aktivně
řízený děj, který je také regulován rychlostí b-oxidace mastných kyselin. Volné
mastné kyseliny přicházející do jater po aktivaci na příslušný derivát CoA
mohou podstoupit buď esterifikaci na triacylglycerol, nebo reagují s karnitinem
na acylkarnitin za přítomnosti karnitinacyltransferasy. V této formě jsou
mastné kyseliny schopné přestoupit mitochondriální membránu (po opětném
uvolnění acyl-CoA působením acylkarnitintransferasy) a dostat se k enzymům
katalyzujícím b-oxidaci
uvnitř mitochondriální matrix. V podmínkách zvýšené ketogeneze (hladovění,
diabetes) stoupá hladina karnitinu a snižuje se malonyl-CoA; to má za následek odklon mastných kyselin od
esterifikace na triacylglyceroly, potencování přenosu do mitochondrií pro
následnou b-oxidaci.
Konečný produkt b-oxidace
acetyl-CoA se může buď kondenzovat na acetoacetyl -CoA, nebo přibírat ještě
další molekulu acetyl-CoA a dát vznik prekursoru cholesterolu 3-hydroxy-beta-methylglutaryl-CoA,
který přechází dále na mevalonát.
Klíčovým
enzymem, který řídí rychlost ß-oxidace, je enzym karnitinacyltransferasa,
umožňující vstup mastných kyselin do mitochondrií. Tento enzym je inhibován
malonyl-CoA. Ketolátky vstupující z jater do krevního oběhu jsou utilizovány
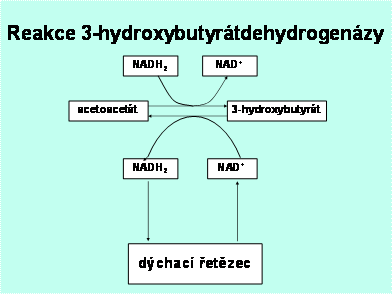
kosterním svalstvem. Primárním produktem je acetoacetát , který však přechází
na 3-hydroxybutyrát. Poměr mezi
acetoacetátem a 3-hydroxybutyrátem, který normálně činí
1: 3, je dán stavem oxidačně-redukčních reakcí v organismu. Poměr 3-hydroxybutyrát/acetoacetát
tedy odráží poměr NADH2/NAD+ (redoxní poměr
mitochondrií), podobně jako poměr laktát/pyruvát ukazuje redoxní poměr
cytosolu. Při hypoxii vzniká více 3-hydroxybutyrátu.
Průkaz ketolátek se provádí pomocí nitroprusidu sodného (Legalova reakce).
Pozitivita Legalovy reakce je závislá na přítomnosti acetonu a acetoacetátu, 3-hydroxybutyrát
s nitroprusidem sodným nereaguje. Paradoxně se tak lze setkat
s negativitou ketolátek při omezení funkce dýchacího řetězce, kdy
neregeneruje v dostatečné míře NAD+. Při obnovení perfúze a
oxygenace tkání se doplňuje pool NAD+, oxiduje se 3-hydroxybutyrát
na acetoacetát a dochází k pozitivitě nitroprusidové reakce.
Hyperketonemie
vzniká při
nadprodukci acetyl-CoA při zvýšené oxidaci mastných kyselin navozené
nedostatkem utilizace glukózy (diabetes, hladovění). Nedostatek inzulinu působí
jednak aktivaci karnitinacyltransferasy, jednak pokles malonyl-CoA, který je
velmi účinným inhibitorem karnitinacyltransferasy. Kromě toho nedostatek
inzulinu znemožňuje utilizaci ketolátek ve svalstvu.
Děje, které
vedou k hyperketonemii pro nedostatek inzulinu, je možno shrnout do tří
vzájemně působících mechanismů:
·
zvýšená
lipolýza tukové tkáně,
·
zvýšená
oxidace mastných kyselin
·
snížená
utilizace ketolátek ve svalstvu.
Hyperketonemie
však nevzniká pouze u diabetu pro nedostatek inzulinu. Ke zvýšené tvorbě
ketolátek vede rovněž protrahované lačnění nebo dieta bez sacharidů.
Mechanismus vzniku je v hlavních rysech podobný jako u diabetu.
Další informace
Jaroslav
Masopust, Antonín Jabor
recenzoval
Dalibor Novotný
Aktualizace Antonín Jabor, 2011-06-07