Receptory - účinek hormonů na buňky je zprostředkován jejich vazbou na specializované struktury s vysokou afinitou – receptory. O tom, zda hormon bude na danou buňku působit rozhoduje do značné míry množství a charakter přítomných receptorů.
Jak počet receptorů v buňce, tak jejich schopnost odpovídat na hormony jsou předmětem regulací. Hovoří se o down nebo upregulaci receptorů.
Receptory mohou být na buněčné membráně, v cytoplasmě, nebo v jádře. Proteinové a peptidové hormony mají receptory na buněčné membráně, zatímco selektivní intracelulární proteiny váží steroidní hormony a hormony štítné žlázy.
Membránové receptory lze rozdělit do několika velkých skupin - rodin:
- Receptory sdružené s G-proteiny (GPCR)
- Tyrozinkinázové receptory
- Cytokinové receptory s asociovanou tyroxin kinázou
- Receptorová serin/threonin cykláza
- Receptorová guanylcykláza
- Ligandem ovládané iontové kanály
Receptor obsahuje velmi specifickou doménu vážící ligand s vysokou afinitou. Další důležitou doménou je místo, zprostředkující vazbu na genom v místě příslušného genu, jehož transkripce má být ovlivněna – na takzvaný hormon response element (HRE). Toto vazebné místo je typicky tvořeno 66-68 aminokyselinami a má dvě poddomény zvané zinkové prsty (kde 4 cysteinové zbytky váží atom zinku).
Vazba ligandu mění transkripci regulovaných genů trojím mechanismem:
1)
Na ligandu závislá aktivace 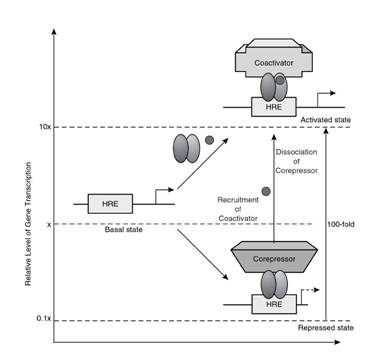 genu.
Receptor s ligandem se váže na HRE, čímž je aktivována transkripce.
Zodpovídá za ni jednak doména vážící ligand, zejména však navázání
koaktivátoru, který se může vázat na DNA jedině v přítomnosti aktivovaného
receptoru.
2) Útlum exprese genu receptorem bez ligandu. Receptor bez ligandu působí navázání krepresotu a inhibuje transkripci. Navázání ligandu uvolní receptor (a korepresor) z vazby na HRE a zvýší transkripci. Rozdíl mezi aktivitou genu v utlumeném a stimulovaném stavu může být stonásobný.
3) Na ligandu závislá represe genu. Navázání receptoru s ligandem vede k uzlumení transkripce. Mechanismy jsou méně prostudované, zřejmě se podílí vazba korepresorů. Jindy vede vazba k odstranění koaktivátorů.
Dimerizace receptorů
|
|
|
|
|
|
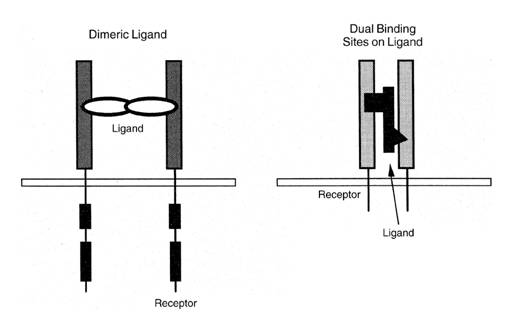
Navázání ligandu vede často k tomu, že se dva receptory spojí –
dimerizují. Tato dimerizace má stěžejní význam pro aktivaci receptrů
z rodiny tyrozinkinázových receptorů, cytokinových receptorů
s asociovanou tyroxin kinázou, ale dochází k ní i v rodině
receptorů spojených s G-proteinem.
Ke spojení dvou receptorů může dojít proto, že ligand je sám dimerický (jako například PDGF) a proto má dvě vazebná místa pro receptor. Některé hormony (například růstový hormon). Mají dvě různá vazebná místa pro receptor. K aktivace receptoru dochází jen tehdy naváží-li se dva receptory a dojde k dimerizaci. Toho bylo využito k vyvinutí antagonisty růstového hormonu k farmakologické léčbě akromegalie (pegvisomantu). Ten má schopnost vázat jen jeden receptor a brání tak v účinku přirozeného růstového hormonu.
 Kromě
homodimerů stejného receptoru se mohou tvořit heterodimery dvou různých
receptorů. Je to známo zejména v rodině tyrozinkinázových receptorů, ale
nověji byly heterodimery objeveny i u receptorů spojených s G-proteinem.
Protože nevelké množství receptorů může tvořit velké množství různých párů,
otvírají se možnosti pro jemné řízení jak vazebných schopností, tak
postreceptorové aktivity.
Některé receptory tvoří již preexistující dimery. Například inzulínový receptor je dimerem dvou α a β podjednotek i v neaktivním stavu. Navázání inzulínu vede ke konfirmačním změnám, vedoucím k aktivaci tyrozinkinázy.
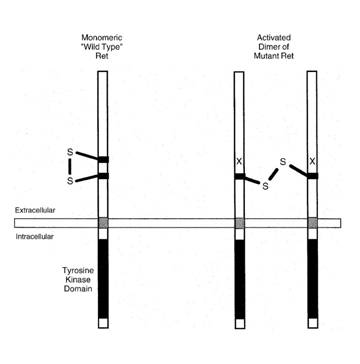
Mutace receptoru vedoucí k jeho trvalé dimerizaci a tedy aktivitě jsou příčinou některých chorob. Ret tyrozin kináza (podjednotka receptoru pro gliální růstový faktor) obsahuje v extracululární doméně cysteinové zbytky, které přispívají k tvorbě intramolekulárních disulficidkých vazeb. Mutace jednoho cysteinu vede k tomu, že je přítomen nepárový cystein, schopný tvořit disulficidkou vazbu s jiným receptorem s trvalou aktivací. Tím se mění Rat na onkogen a vzniká mnohočetná endokrinní neoplazie typu II.
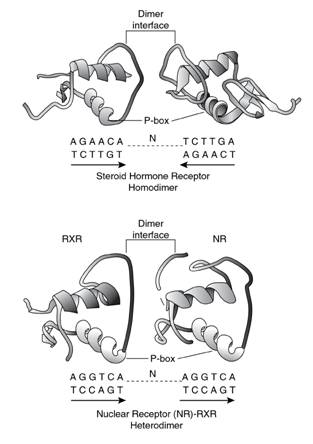 Dimery
tvoří i receptory nukleární. Například estrogenní receptor působí jako
homodimer, což umožňuje vazbu na dvě místa hormon response element (HRE) na
genomu, které jsou zrcadlově homologií (inverted repeats).
V případě steroidních receptorů vazba glukokortikoidů urychluje dimerizaci a zvyšuje vazbu na DNA.
Řada receptorů (TR, PPAR, RAR, VDL) se váže na DNA jako heterodimer s retoinoidním receptorem X (RXR). Heterodimerizaci zprostředkuje hlavně doména vážící lignad a dochází k ní i mimo vazbu na DNA.
Down- a up-regulace receptorů
Množství receptorů v buňce i jejich schopnost odpovídat na hormonální podnět jsou předmětem regulací. Zvýšení počtu a/nebo aktivity se nazývá upregulace receptorů a snížení počtu a/nebo aktivity downregulace receptorů. Množství membránových receptorů se mění v důsledku jejich internalizace. Po navázání hormonu je receptor pohlcen mechanismem endocytózy. Komplex hormon-receptor je následně disociován, což vede k u končení hormonem vyvolaného signálu.
Mechanismus downregulace může spočívat i v desenzibilizaci receptoru (například v případě katecholaminového receptoru) nebo ligandem způsobené fosforylaci samotného receptoru, která vede k jeho reverzibilní deaktivaci. V některých případech existují specifické inhibitory postreceptorové signální kaskády, například suppressor of cytokine signaling (SOCS) proteiny inhibující Janus kináza [JAK]-STAT signální dráhu cytokinových receptorů.
Některé receptory (například inzulínový) se mohou následně dostat z buňky zpět na membránu mechanismem exocytózy. Tento proces je nazývá externalizace receptorů a vede k jeho up-regulaci.
Downregulace vyvolaná působením hormonu se nazývá desenzibilizací. Ta může být způsobena ligandem příslušného receptoru (homologií desenzibilizace), nebo jiným signálem (heterologní desenzibilizace).
Další informace
Jan Čáp