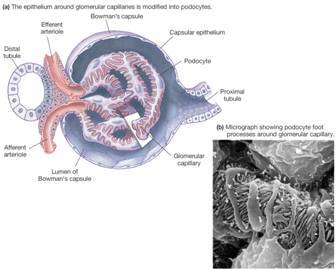
Glomerulus je část nefronu tvořená klubíčkem krevních kapilár s přívodní (aferentní) arteriolou a menší odvodní (eferentní) arteriolou. Glomerulus je obklopen Bowmanovým pouzdrem, tvořeným rozšířeným zakončením proximálního tubulu.
 Jako Bowmanův prostor
se označuje prostor vzniku primární moče, tedy ultrafiltrátu krevní plazmy
mechanismem označovaným jako glomerulární filtrace.
V tomto procesu musejí voda, soluty a větší molekuly proniknout třemi vrstvami: endotelem glomerulárních kapilár s fenestracemi širokými kolem 70 nm, bazální membránou s průměrnou tlouštkou kolem 320 nm a vrstvou podocytů, kterou jsou od sebe vzdáleny 25 až 60 nm.
Bazální membrána je složena ze tří vrstev, centrální lamina densa s vyšší hustotou, vnější lamina rara externa a vnitřní lamina rara interna s menší hustotou. Lamina densa je silná asi 3 nm a tvoří ji jemně vláknitá struktura.
Proces glomerulární filtrace vychází ze Starlingova zákona rozdílu hydrostatických a onkotických tlaků na semipermeabilní membráně. Buňky a makromolekuly za fyziologických podmínek přes semipermeabilní membránu neprocházejí.
Glomerulus lze považovat za účelově modifikovanou soustavu kapilár, jejichž stěna umožňuje ultrafiltraci krevní plasmy a tvorbu intersticiální tekutiny, řádově účinnější a dokonalejší než v běžných kapilárách.
Lumen přívodné hilové tepénky, vas afferens, je vystláno plochým endotelem, který spočívá na elastické bazální membráně. Tunika media, kontraktilní vrstva vas afferens, je tvořena jednou až dvěma vrstvami myoepiteliálních buněk, na které přiléhá zevní adventicie z nečetných pojivových buněk
a extracelulárního pojiva. Vas afferens se v hilu glomerulu větví v 4 - 8 segmentů, z nichž každý vytváří 20 - 40 vzájemně anastomosujících kliček, které se opět sbíhají v odvodnou tepénku, vas efferens. Její stěna je poněkud tenčí než u vas afferens a má analogickou strukturu.
Stěnu glomerulární kapiláry tvoří intraluminální plochý fenestrovaný endotel a periferní, do Bowmanova prostoru obrácený viscerální epitel (podocyty), mezi oběma epitelovými vrstvami je uložena extracelulární bazální membrána. Podíl těchto tří strukturních vrstev kapilární stěny se však v průběhu kapilární kličky mění: na straně přivrácené ke středu glomerulu, k hilu, bazální membrána a viscerální epitel chybí a nesouvislá vrstva endotelu spočívá přímo na matrix mesangia (viz dále). Na zevní straně kličky, přivrácené do Bowmanova prostoru, se na její struktuře účastní všechny tři vrstvy.
Jádro endotelové buňky je umístěno zpravidla na centrálním, k hilu glomerulu přivráceném obvodu kapiláry. Cytoplasma endotelové buňky pokrývá ve formě tenké, asi 40 -5O nm silné nesouvislé vrstvy celou vnitřní plochu kapiláry. Značná část ploché cytoplasmy je pseudoperforovaná poměrně pravidelně rozmístěnými otvory o přibližném průměru 50 - 100 nm (fenestra). Kolem jádra, na obvodu cytoplasmy a mezi fenestry vytváří cytoplasma ploché, pásovité vyvýšeniny, hřbety. Na povrchu endotelu jsou vláknité makromolekuly sialoglykoproteinů (glykokalyx) s četnými elektronegativními povrchovými náboji, které ve svém úhrnu vytváří na vnitřní ploše kapiláry repulsivní elektrostatickou bariéru.
Buňky viscerálního epitelu, tzv. podocyty, pokrývají zevní, do Bowmanova prostoru přivrácené povrchy glomerulárních kapilár. Jsou to největší buňky v glomerulu, mají charakteristický tvar, který bývá přirovnáván k tělu chobotnice nebo pavouka: objemné jádro buňky vyčnívá do Bowmanova prostoru a kapilární kličky obepínají cytoplasmatické výběžky, které se postupně větví v terminální, paralelně probíhající pedicely (foot processes). Pedicely sousedících podocytů se typickým způsobem vzájemně proplétají (tzv. interdigitace, obraz zdrhovadla) a mezi sebou vytvářejí systém interpedicelárních, asi 20 - 60 nm širokých a 300 - 500 nm vysokých štěrbin. Pedicely jsou do periferní vrstvy bazální membrány jakoby poněkud zanořeny. Interpedicelární štěrbiny odděluje od lamina rara externa asi 4 - 6 nm silná štěrbinová membrána (slit membrane). Středem této membrány, uprostřed mezi oběma pedicelami probíhá centrální filamentum, z něhož po stranách vybíhají a na buněčný povrch pedicel se upínají vlákna. Vzájemným křížením vláken vzniká síť pravidelných otvorů.
V cytoplasmě podocytů je bohaté endoplasmatické retikulum, četné lyzosomy, mikrotubuly a mikrofilamenta. V rozšířených prostorách těchto celulárních organel bývají někdy homogenní denzitní depozita, která jsou pravděpodobně projevem aktivní syntézy bílkovin bazální membrány. Na povrchu podocytů a na stěnách interpedicelárních štěrbin jsou opět hydratované molekuly podokalyxinu s četnými elektronegativními polárními skupinami. Vzájemná elektrostatická repulse povrchových nábojů zřejmě přispívá k funkční architektuře podocytů, tj. k formování pedicelárních výběžků. Integrita struktury pedicel a štěrbinové membrány pravděpodobně ovlivňuje objem vody protékající glomerulární stěnou a tím nepřímo i transport plasmatických bílkovin do ultrafiltrátu. V oblasti glomerulárního hilu přechází viscerální epitel do tenkovrstevné, ploché výstelky Bowmanova pouzdra.
Bazální membrána glomerulární kapiláry je asi 300 - 320 nm silná, na její vnitřní straně je kapilární endotel nebo mesangiální buňky a matrix, na zevní straně viscerální epitel. V elektronovém mikroskopu je bazální membrána zřetelně nehomogenní. V jejím středu probíhá tmavá denzní vrstva (lamina densa), po obou stranách je bazální membrána elektronlucidní (lamina rara interna a externa).
Na ultrastruktuře bazální membrány se podílí pět základních složek: kolagen IV typu, laminin, heparan-sulfátový proteoglykan, endactin a fibronectin. Monomerní molekuly kolagenu IV typu jsou asi 400 nm dlouhé, s krátkým zalomením ve tvaru čepele hokejové hole na N-terminálním a kulovitým tvarem na C-terminálním konci molekuly. Spojením globulárních C-konců vznikají dimery, paralelním přiložením N-konců tetramery kolagenu. Dimery nebo trimery kolagenu mohou vznikat také postupným podélným přikládáním molekul k sobě. Vzájemným propojením monomerů, dimerů, trimerů a tetramerů molekul kolagenu vzniká trojrozměrná síť s vnitřními prostory o průměru 8 -14 nm, která tvoří elastický skelet lamina densa, v menší míře i lamina rara interna a externa bazální membrány. Jednotlivá vlákna sítě (cords) jsou různě silná, podle toho, kolik molekul kolagenu se na jejich struktuře podílí.
Molekula lamininu má tvar kříže s třemi krátkými raménky, na nichž jsou vazebná místa pro kolagen IV typu a jedním delším raménkem s vazebným místem pro heparan-sulfát proteoglykan.
Osu dlouhých molekul heparan-sulfát proteoglykanu tvoří dva paralelně probíhající polypeptidové řetězce, na které jsou kovalentně navázány četné postranní heparan-sulfátové a chondroitin-sulfátové skupiny. Jejich elektronegativní náboje se v největší míře podílejí na elektrostatických repulsivních vlastnostech glomerulární membrány, především v lamina rara interna a externa.
Endactin a fibronectin jsou glykoproteiny s vysokým obsahem karboxylových skupin aminokyselin a kyseliny sialové. Struktura jejich molekul, detailní lokalizace v ultrastruktuře bazální membrány ani podíl na selektivní permeabilitě glomerulární stěny nejsou dosud spolehlivě známy.
Na povrchu kolagenu navázané molekuly lamininu a proteoglykanu vyčnívají jako chmýří do prostor sítě. Hustota elektronegativních nábojů je zřejmě největší na povrchu vláken sítě a ubývá jí do středu prostor sítě. Molekuly bílkovin větších než jsou vnitřní prostory sítě vylučuje z filtrace jejich velikost, molekuly albuminu, které by se do prostor sítě vešly, jejich náboj. Malé, volně filtrovatelné molekuly plasmatických mikroproteinů zřejmě pronikají bazální membránou středem prostor, tj. místy nejmenší elektrostatické repulse, která jejich malý elektronegativní náboj již neregistruje.
Další informace
Miroslav Engliš