Nadledviny tvoří zhruba pyramidovou strukturu asi 2 cm vysokou, 4 - 6 cm dlouhou a širokou do 1 cm. Jsou složeny z kůry (představující 90 % z celkové hmotnosti 5 g) a dřeně, která má zcela odlišný embryonální původ a funkci. Kůra nadledvin je mezenchymálního původu, lze ji histologicky rozlišit na zóna glomerulosa (15 %) pod pouzdrem, fasciculata (75 %) a reticularis při dřeni.
 Kůra
produkuje steroidní hormony s účinkem mineralokortikoidním (zóna
glomerulosa), glukokortikoidním a androgenním (zóny fasciculata a retikularis).
Dřeň nadledvin je součástí sympatoadrenálního systému, pochází z ektodermu nervové lišty, odkud buňky putují ventrálně a diferencují se v buňky dřeně, obsahující katecholaminy – feochromocyty, neboli chromafinní buňky (od jejich schopnosti barvit se chromovými solemi).
Část chromafinních buněk zůstává mimo dřeň, podél paravertebrálního sympatického řetězce a preaortálních sympatických plexů břišních, kde tvoří paraganglia (největší je Zuckerkandlův orgán pod odstupem a. mesenterica inferior). Jejich funkce není jasná, během postnatálního života regredují, mohou však být zdrojem vzniku extraadrenálně uloženého nádoru (feochromocytom). Funkcí dřeně nadledvin je produkce katecholaminů (z 85 % adrenalinu), který je spolu s endogenními opioidy (β-endorfinem, enkefaliny) vyplavován do oběhu na základě nervových podnětů, zprostředkovaných cholinergní presynaptickou sympatickou inervací.
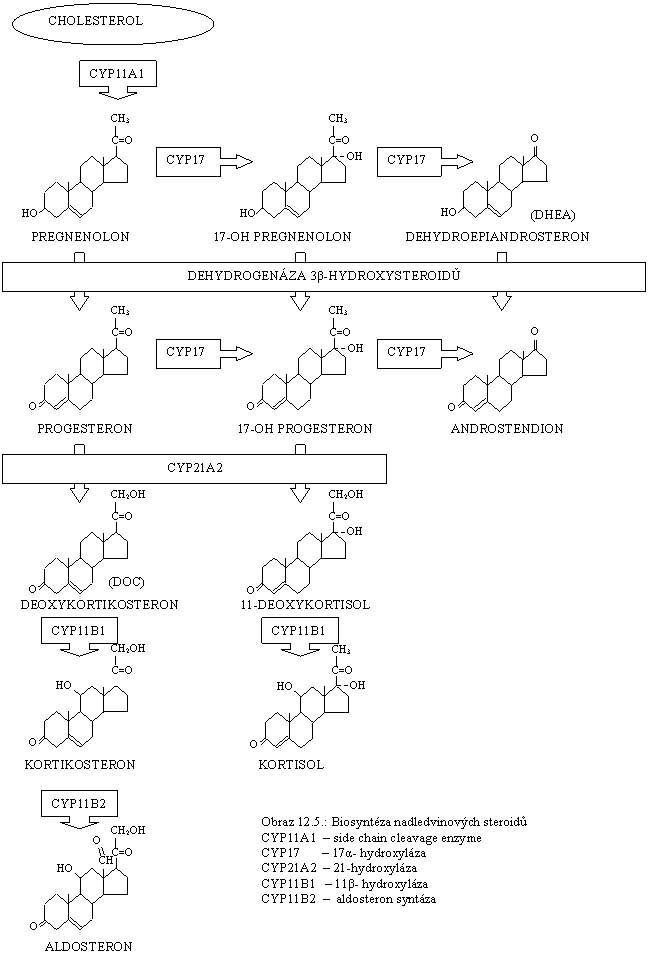
Steroidní hormony jsou syntetizovány v kůře nadledvin z cholesterolu. Odštěpení postranního řetězce cholesterolu a hydroxylační kroky v poloze 17, 21 a 11 zajišťují oxidační enzymy ze skupiny CYP (dříve označované jako cytochromy p450). Nazývají se také jako postranní řetězec štěpící enzym (CYP11A1), 17α hydroxyláza (CYP17), 21 hydroxyláza (CYP21A2) a 11β hydroxyláza (CYP11B1). Dehydrogenáza 3β-hydroxisteroidů do skupiny CYP enzymů nepatří.
Podle účinku dělíme steroidní hormony, tvořené v kůře nadledvin na:
- Glukokortikoidy (kortizol, kortikosteron) působí jednak přímo, kdy po vazbě na nitrobuněčný receptor regulují transkripci genů, jednak nepřímo tím, že podporují účinek jiných hormonů (permisivní účinek). Ovlivňují metabolismus glukózy (inhibice glykogenolýzy, aktivace glykogen syntázy a glukoneogenezy přímo i permisivním účinkem k efektu glukagonu a adrenalinu, inhibice periferní utilizace glukózy), metabolismus bílkovin (proteolytický účinek s mobilizací glukogenních aminokyselin), tuků (lypolytický efekt a redistribuce tuku – částečně nepřímo skrze permisivní účinek k efektu růstového hormonu a katecholaminů a sekundární hyperinzulinémii). Jejich účinky protizánětlivé, imunosupresivní, antiedematózní a antialergické a někdy též hyperglykemizující, snižující kalcium, udržují cévní tonus, stabilizují buněčné membrány aj.se využívají terapeuticky. Tlumí novotvorbu a aktivují rezorbci kostní hmoty, způsobují úbytek svalové hmoty a myopatii, zhoršují hojení ran, vedou ke vzniku peptických vředů, snižují rezistenci organismu, mají efekt hyperlipidemický, aterosklerotický, hyperkoagulační, diabetogenní, ovlivňují psychiku a v dětství zastavují růst. Mají i účinek mineralokortikoidní - natriumretenční a hypokalemizující.
- Mineralokortikoidy (aldosteron, deoxykortikosteron) působí zvýšení permeabilitidy distálního nefronu (distálního tubulu a sběracího kanálku) pro sodík, a tak zvýšenou reabsorpci sodíku (s následnou retencí tekutiny) a zvýšené ztráty K+ a H+ močí.
- Androgeny (androstendion, dehydroepiandrosteron) jsou slabé androgeny, ale v periferních tkáních se mění na účinný androgen testosteron. Mají anabolický a virilizační účinek.
- Estrogeny (estradiol a estron) jsou tvořeny minimálně, vznikají však v periferních tkáních aromatizací z DHEA a androstendionu.
Protože v zóna glomerulosa není přítomen CYP17, tvoří se zde především deoxykortikosteron a aldosteron s mineralokortikoidním účinkem.
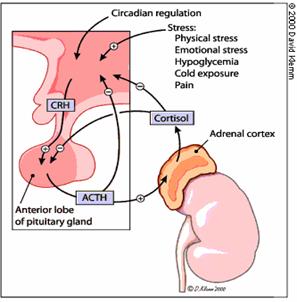
Sekrece glukokortikoidů je regulována hypofyzárním ACTH.
Vyplavování aldosteronu je řízeno především systémem renin-angiotenzin. Enzym renin je produkován juxtaglomerulárním aparátem kůry ledvin a podnětem k jeho tvorbě je zejména snížení tlaku v aferentní arteriole (hypovolémie, postavení, zúžení renální tepny), v menší míře snížení sodíku v tubulu detekované macula densa a betaadrenerní sympatická stimulace. Renin štěpí bílkovinu produkovanou v játrech (reninový substrát) na dekapeptid angiotenzin I a tento je rychle měněn angiotenzin konvertujícím enzymem na oktapeptid angiotenzin II, který kromě vazokonstrikčního účinku je stimulátorem aldosteronu. Sekreci aldosteronu také přímo zvyšuje kalium a ACTH.
Estrogeny a androgeny jsou řízeny pomocí ACTH jako glukokortikoidy.
Steroidní hormony jsou v séru vázány na specifické vazebné proteiny – cortisol binding globulin (CBG), sexual hormones binding globulin (SHBG) a v menší míře na albumin. Tato vazba tlumí rychlé výkyvy v koncentraci a prodlužuje biologický poločas. Hormony jsou vylučovány močí v malé míře nezměněné (kortisol z 1 %), z větší části po metabolické inaktivaci v játrech.
Katecholaminy ve dřeni nadledvin jsou syntetizovány z aminokyseliny fenylalaninu – přes dopamin vzniká noradrenalin a z něho metylací adrenalin. Fyziologický účinek katecholaminů je dán působením na alfa a beta receptory sympatiku a zahrnuje účinky kardiovaskulární, metabolické, ovlivnění sekrece exokrinních žláz a motility hladké viscerální svaloviny, termogenezi, ovlivnění sekrece a účinku řady hormonů, hemostázy a další. Účinky jsou zprostředkovány různými druhými posly a mohou být i protichůdné podle zastoupení určitého receptoru v dané tkáni.
Rozdíly v účinku adrenalinu a noradrenalinu jsou dány jejich afinitou k jednotlivým receptorům.
- Noradrenalin váže slabě receptor β-2, působí proto čistou vazokonstrikci s hypertenzí a reflexně bradykardií,
- adrenalin naopak působí i vazodilataci ve svalech, tachykardii a snížení diastolického tlaku.
Účinky adrenalinu (A) a noradrenalinu (NoA) zprostředkované jednotlivými typy adrenergních receptorů. cAMP – cyklický adenosin monofosfát, IP3 – inozitol trifosfát, DAG – diacylglycerol.
|
Receptor |
α-1 |
α-2 |
β-1 |
β-2 |
|
Stimulace |
A=>NoA |
A=>NoA |
A=NoA |
A>>NoA |
|
Druhý posel |
Ca++ - IP3 , DAG |
CAMP |
cAMP |
CAMP |
|
Příklady účinků |
vazokostrikce relaxace střeva, kontrakce dělohy
dilatace zornic |
agregace destiček vazokonstrikce |
stimulace srdce lipolýza relaxace střeva glykogenolýza |
bronchodilatace
vazodilatace relaxace dělohy |
Katecholaminy jsou vylučovány jen v minimální míře nezměněny močí
(0,1 % adrenalinu), poněkud více ve formě konjugované, většina ve formě
metabolitů – O-metylovaných aminů (metanefrinu a normetanefrinu) a zejména
kyseliny vanilmandlové a 3-metoxy-4-hydroxyfenylenglykolu (MHPG). Konečným
metabolickým produktem dopaminu je kyselina homovanilová.
Vyšetřovací metody - kromě řady zobrazovacích metod se při funkčním vyšetření se uplatňuje vyšetření hladiny steroidů v séru pomocí radioimunoanalýzy (kortisol, aldosteron, DHEAS, androstendion, 17-hydroxyprogesteron) a vyšetření stimulačních hormonů – ACTH, plazmatická reninová aktivita (PRA). Denní produkci steroidů nejlépe posoudíme podle vylučování močí za 24 hodin. V moči vyšetřujeme výdej volného kortisolu, který citlivě odráží zejména zvýšenou denní produkci kortisolu, 17-hydroxysteroidů (17-OHCS) zahrnující metabolity s dihydroxyacetonovou strukturou v poloze 17, tj. především kortisolu a kortisonu, ale také 11-deoxykortisolu a tedy produkci glukokortikoidů a 17-ketosteroidy (17-KS) zahrnující metabolity steroidů s ketoskupinou v poloze 17 tedy zejména nadledvinových androgenů DHEA a androstendionu, ale také estronu.
Další informace
Klinická biochemie hormonálních poruch
Jan Čáp