Ochranné mechanismy při působení
reaktivních forem kyslíku
V biologických
materiálech se setkáváme se dvěma způsoby ochrany proti kyslíkovým reaktivním
formám. Jedná se na jedné straně o ochranu prostřednictvím enzymů, které
katalyzují reakce na odstranění škodlivých kyslíkových intermediátů, nebo o
mechanismy neenzymové regulace nežádoucích vlivů volných kyslíkových radikálů
(VKR). Antioxidační systémy se uplatňují při snížení lokální koncentrace
kyslíku, brání katalytickému působení kovových prooxidačních iontů jako jsou
železo nebo měď, omezují reaktivní formy kyslíku jako superoxid a
hydrogenperoxid, odklízí vznikající volné kyslíkové radikály a singletový
kyslík, jsou schopny také zastavovat řetězovou reakci iniciace radikálů. Podle lokalizace
působení lze antioxidanty dělit na buněčné, membránové, extracelulární a
lipoproteinové (Brown and Goldstein, 1983, Jialal and Devaraj, 1996,
Gutteridge, 1995).
Enzymové ochranné mechanismy jsou výhodné z hlediska zachování esenciálních látek
v buňce, jejich účinnost se však vztahuje pouze k eliminaci peroxidu
vodíku a superoxid anion radikálu, proti hydroxylovým radikálům a singletovému
kyslíku je tato ochrana nevýznamná. Podle hlediska, jak se enzymy uplatňují
v metabolismu se rozlišují a) enzymy podílející se při tvorbě VKR, b)
enzymy přeměňující jednu reaktivní formu kyslíku na jinou, c) enzymy
odstraňující VKR (Racek and Holeček, 1999).
Základním antioxidačním
enzymem je superoxiddismutáza (SOD, EC 1.15.1.1) patřící
do skupiny enzymů přeměňujících reaktivní formu kyslíku na jinou. SOD je
zastoupena v mitochondriích a cytosolu, byla nalezena téměř ve všech aerobních
organismech. Všechny typy SOD jsou metaloproteiny (významné jsou SOD-CuZn,
SOD-Mn, SOD-Fe). SOD katalyzuje dismutační reakce, jejichž mechanismus je založen na redoxním cyklu.
Kov v aktivním místě enzymu je redukován jedním O2-. a
pak reoxidován druhým O2-.. Reakční mechanismus
dismutační reakce lze popsat rovnicemi (1)
a (2):
SOD-Mn + O2-. ¾® SOD-Mn-1 +
O2 (1)
SOD-Mn-1 + O2-. + 2H+ ¾® SOD-Mn
+ H2O2 (2)
Neméně významným enzymem
této třídy je myeloperoxidáza (MPO, EC 1.11.1.7)
katalyzující reakci peroxidu vodíku s chloridovými ionty za vzniku dalšího
produktu s vysokými oxidačními účinky, kyseliny chlorné. Myeloperoxidáza
je glykoprotein uvolněný při aktivaci polymorfonukleárních neutrofilů, které
jsou součástí ochranného mechanismu při produkci potenciálního oxidantu HOCl.
Podílu MPO v patogenezi aterosklerózy je přisuzován mechanismus MPO/H2O2/Cl-,
literárně je doložena možnost konverze LDL na aterogenní lipoprotein
s přispěním MPO (Hoy, 2002).
|
|
Superoxiddismutasy
(SOD) konvertují superoxid produkovaný
v cytosolu a v mitochondriích na peroxid vodíku a kyslík.
Glutathionperoxidasa (GPx) využívá peroxid vodíku ke konverzi redukovaného
glutathionu (GSH) na jeho oxidovanou formu (GSSG). Prostřednictvím
glutathionreduktasy (GR) dochází k redukci GSSG zpět na GSH při současné
oxidaci NADPH. Katalasa se podílí na rychlém rozkladu peroxidu vodíku. |
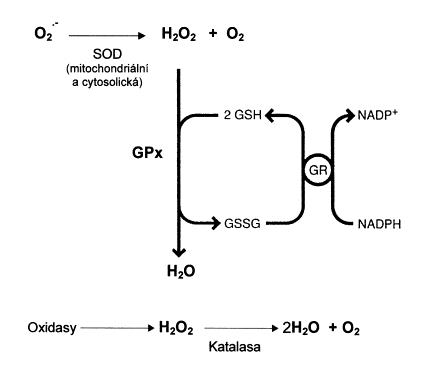
Mezi enzymy odstraňující VKR
patří především kataláza (EC 1.11.1.6) a glutathionperoxidáza (GPx, EC 1.11.1.9). Kataláza je
přítomna v peroxisomech (80%) a cytosolu (20%), zajišťuje přeměnu peroxidu
vodíku na vodu a kyslík:
2 H2O2 ® 2 H2O + O2 (3)
Kataláza působí na peroxid
vodíku ve vysokých koncentracích, tím se liší od peroxidáz, kde kromě peroxidu
vodíku působí ještě další reakcí oxidovaný kosubstrát (Racek and Holeček,
1999).
Důležitým zástupcem
peroxidáz mezi enzymy antioxidačního ochranného systému je glutathionperoxidáza
(GPx) významná při odstraňování H2O2 a lipidových hydroperoxidů.
GPx se vyskytuje ve třech formách, aktivita glutathionperoxidáz přítomných
v extracelulární tekutině je podmíněna přítomností selenu (v aktivním
centru obsahují aminokyselinu selenocystein), naproti tomu fosfolipidová GPx
vázaná v membráně neobsahuje selen a její afinita je vyšší pro peroxidy lipidů
než pro H2O2. GPx katalyzuje (14) štěpení peroxidu při současné
oxidaci cystein obsahujícího glutathionu (GSH):
XOOH +
2 GSH ® XOH + H2O + GSSG (4)
X - atom vodíku nebo alkylový řetězec
Funkci glutathionperoxidáz
zajišťuje svou účastí na plynulé regeneraci glutathionu zpět do redukované
formy enzym glutathionreduktáza (GR, EC 1.6.4.2), ke
svému působení vyžaduje přítomnost NADPH.
Důležitou roli
v regulaci buněčných funkcí má nitroxidsyntáza (NOS) katalyzující přeměnu
argininu na citrulin. NOS je schopná redukovat kyslík prostřednictvím NADPH i v nepřítomnosti hlavního
substrátu argininu, výsledkem tohoto katalytického působení je pak superoxid
anion radikál nebo peroxid vodíku. Rozlišovány jsou v podstatě dva typy
NOS – konstitutivní a inducibilní (Racek and Holeček, 1999).
Neenzymové ochranné mechanismy mohou být zprostředkovány reakcemi VKR a
esenciálních komponent buňky (např. tyrosinu nebo methioninu). Tyto ochranné
látky jsou oxidovány nebo redukovány za vzniku peroxidu vodíku, alkoholů,
ketonů apod.
Ochrana před singletovým kyslíkem (1O2) může být
např. vedena dvěma mechanismy, v jednom případě 1O2 předá
energii molekule tzv. odklízeče (zametače, scavengeru), a sám přechází do
základního stavu kyslíku, druhým mechanismem dochází i inkorporaci kyslíku do
molekuly tohoto odklízeče.
Tripeptid glutathion
se podílí na ochraně DNA proti poškození ionizujícím zářením, je výzamným
substrátem pro glutathionperoxidázu (Gpx) a glutathiontransferázu a slouží také
jako neenzymový odklízeč singletového kyslíku a hydroxylového
radikálu.
Singletový kyslík je vychytáván
také beta-karotenem
přítomným v membránách. Energie VKR přenesená na molekulu b-karotenu je uvolňována rozkladným procesem nebo
absorpcí a reverzibilní izomerií, kdy cis
dvojná vazba v molekule b-karotenu
přechází na trans konfiguraci.
Významné místo
v přehledu neenzymových ochranných systémů zaujímá kooperace dvou
antioxidačních vitamínů: vitamínu E (a-tokoferolu) rozpustného v tucích a proto také
lokalizovaného převážně v membránách a ve vodě rozpustného vitamínu C (askorbátu).
Vysoká biologická aktivita vitamínu E se vysvětluje stabilizací
strukturně-funkčních vlastností biologických membrán
buď prostřednictvím inhibice lipoperoxidace (LPO), nebo
stabilizací lipidové dvojvrstvy nevazebnými interakcemi, či zhášením
molekulárního kyslíku. Polyfunkční působení vitamínu E je podmíněno dvěma zcela
odlišnými fragmenty molekuly – chromanolovým jádrem s OH skupinou a
fytolovým řetězcem. Díky této struktuře se tokoferoly ukládají
v membránách buněk všech tkání v těsném sousedství polynenasycených
mastných kyselin (PUFA) membránových fosfolipidů (1 mol tokoferolu ochrání před
oxidací 220 mol PUFA) a v sousedství membránových enzymů, např. izoenzymů
cytochromu P-450, které při detoxikaci cizorodých látek produkují VKR.
Oxidované LDL částice, produkované při oxidaci LDL volnými kyslíkovými
radikály, jsou pro cirkulující monocyty a makrofágy chemoatraktanty. Tokoferoly
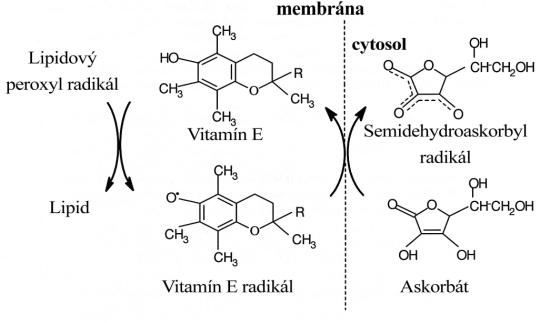
přijímají elektrony VKR ochotněji a rychleji než membránové PUFA, při
odstraňování VKR reaguje fenolická hydroskupina tokoferolu s lipidovým
peroxyradikálem za vzniku organického hydroperoxidu a relativně stabilního
tokoferylového radikálu. Na regeneraci tohoto radikálu zpět do biologicky
účinné formy (obr. 1) se podílí především kyselina askorbová (vitamín C) (Bowry
et al., 1992), ale také cystein či glutathion.
V erytrocytech se oxidovaný tokoferol redukuje prostřednictvím enzymu
NADH-cytochrom c reduktázy. Za extracelulární antioxidant vitamín C je
považována samotná kyselina L-askorbová (AA) nebo její směs s kyselinou
dehydro-askorbovou (DHAA). Oxidace kyseliny L-askorbové na dehydro-askorbovou
je reversibilní a obě složky jsou považovány za biologicky aktivní (Burtis and
Ashwood, 1999, Kaplan and Pesce, 1996, Bates, 1997).
obr. 1: Mechanismus
vzájemného působení vitamínů E a C
|
|
Mezi další možné lapače
radikálů patří např. kyselina močová, která váže železo a brání tak iontům Fe3+
podílet se na vzniku OH.,
albumin při nízké koncentraci, nižší než fyziologické je schopen reagovat s
hydroxylovými radikály, inhibuje LPO stimulovanou měďnatými ionty, do
systému neenzymového odklízení VKR přispívají také reakce některých aminokyselin (tryptofan) a
glykoproteinů (ceruloplazmin).
Fenolové a polyfenolové
sloučeniny mohou jako primární antioxidanty interferovat s oxidací lipidů
v kompetitivní reakci tím, že reagují s radikály hydroperoxidů (ROO.)
nebo alkoxylovými radikály (RO.) a poskytují tak atom
vodíku, čímž přeruší řetězovou radikálovou reakci lipidů. Ověřování mechanismu
působení polyfenolových látek (katechinů, flavanolů, anthokyanidinů) je
v posledních letech věnována značná pozornost (Rimm et al., 1999, Šmidrkal
et al., 2001, Čopíková, 2001).
Literatura:
·
Bates CJ. Vitamin
Analysis. Ann Clin Biochem 1997; 34, 599 – 626.
·
Bowry VW, Ingold KU,
Stocker R. Vitamin E in human low-density liporpotein: when and how is
antioxidant becomes a prooxidant. Biochem J 1992; 288: 341-344.
·
Burtis CA , Ashwood ER
(Eds) . Tietzbook of Clinical Chemistry. 3rd Edition. Philadelphia. W. B. Saunders , 1999.
·
Čopíková J. Čokoláda a
zdraví. Chem Listy 2001;
95: 610 – 615.
·
Kaplan LA , Pesce AJ (
Eds.). Clinical Chemistry. Theory, Analysis, Correlation. 3 Edition. St. Louis.
Mosby, 1996.
·
Hoy A, Leininger-Muller
B, Kutter D et al. Growing significance of myeloperoxidase in non-infectious
diseases. Clin Chem Lab Med 2002; 40(1): 2-8.
·
Racek J a Holeček V.
Enzymy a volné radikály. Chem Listy 1999; 93: 774 – 780.
Další informace:
·
Volné kyslíkové radikály:
charakteristika
·
Volné kyslíkové radikály
a proces aterogeneze
·
Volné kyslíkové radikály:
LPO
·
Volné kyslíkové radikály:
zdroje
Jaroslava Vávrová
.