Imunoglobuliny jsou glykoproteiny tvořené z 82 - 96 %
polypeptidy a ze 4 - 18 % sacharidy. Polypeptidická složka nese většinu
biologických vlastností molekul protilátek. Protilátky jsou bifunkční molekuly,
protože vedle vazby antigenů také iniciují další biologické pochody, jako jsou
např. fixace komplementu a uvolnění histaminu žírnými buňkami. Oba tyto děje
jsou nezávislé na specifitě protilátky. Jak lze očekávat, jsou molekuly
protilátek extrémně heterogenní, především z hlediska jejich diverzity, tj.
široké škály antigenů, které mohou vázat, a také z hlediska různých
biologických aktivit následujících po vazbě antigenů. Heterogenitu protilátek
lze velmi snadno ilustrovat sérologickými a elektroforetickými metodami,
stanovením sekvence aminokyselin jejich polypeptidických řetězců.
Intenzivní studie struktury molekul protilátek vyústily ve dva základní
objevy. Prvním bylo zjištění, že enzym a redukční činidla štěpí, resp.
disociují molekuly imunoglobulinů na menší složky. Dalším, neméně významným
zjištěním byla identifikace elektroforeticky homogenních proteinů nacházených v
sérech pacientů s mnohočetným myelomem. Bylo totiž prokázáno, že tyto
elektroforeticky a strukturně homogenní frakce tvoří imunoglobuliny. Protože
jsou na rozdíl od normálních imunoglobulinů produkovány pouze jedním klonem
buněk, jsou označovány jako imunoglobuliny monoklonální (dříve paraproteiny).
Klon v tomto kontextu odpovídá jednomu buněčnému progenitoru. Naše současné
poznání struktury imunoglobulinů vychází z výsledků studií provedených na
monoklonálních, ale také polyklonálních imunoglobulinových vzorcích. Pro
diskusi o struktuře imunoglobulinů je nezbytné nejdříve uvést seznam definicí
termínů používaných jak v následujícím textu, tak obrázcích.
Základní jednotka
Molekuly imunoglobulinů jsou
tvořeny stejným počtem lehkých a těžkých řetězců, obecně je lze molekulu popsat
vzorcem (H2L2)n. Řetězce jsou
navzájem spojeny nekovalentními vazbami a disulfidickými
můstky.
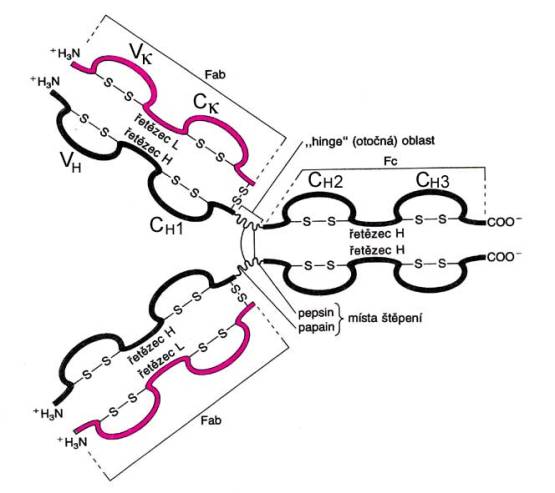
Výsledkem těchto vazeb a
interakcí je dvoustranně symetrická struktura. Tuto základní strukturu mají
všechny normální imunoglobuliny i ty izotypy, které
jsou polymerní. Disulfidické můstky mezi cysteinovými zbytky polypeptidového
řetězce vytvářejí na řetězci smyčky (domény), které mají více méně konstantní
velikost, obsahují 100 - 110 zbytků aminokyselin. N-koncová doména každého
řetězce vykazuje mnohem větší variabilitu v sekvenci aminokyselin než ostatní,
relativně konstantní domény, a proto byla také označena jako variabilní
(V). Úsek, kterým je oblast V připojena k C,
je nazýván oblastí přesmyku („switch"). Obecně jsou molekuly
imunoglobulinů rezistentní vůči proteolytickému štěpení. Jsou-li štěpeny, pak
především v části mezi prvou a druhou doménou (CH1 a CH2).
Papapin štěpí molekulu IgG na N-koncové části interřetězcových disulfidických
můstků za vzniku 3 fragmentů podobné velikosti: 2 Fab fragmentů
obsahujících VH,
CH1, VL a CL (tj. celý řetězec L) a l
Fc fragment složený z obou polovin řetězců H.
Pepsin naopak štěpí molekulu IgG za vzniku velkého F(ab)´2
fragmentu. Fc fragment je pepsinem dále štěpen na malé peptidické
fragmenty. Oblast řetězce H podléhající proteolytickému štěpení
je značně flexibilní a nemá globulární strukturu (viz Struktura
proteinů terciární, proto je také více vystavena všem zevním účinkům. Pro
svoji flexibilitu, která je charakteristickým znakem této části
imunoglobulinové molekuly, je nazývána jako sklopná, otočná („hinge")
oblast. Vazebná aktivita protilátek je lokalizována na Fab
částech imunoglobulinových molekul, přesněji vyjádřeno na VL a VH doménách,
zatímco ostatní biologické aktivity (např. fixace komplementu) jsou
lokalizovány na oblasti Fc fragmentu.
Další informace
·
Sekreční komponenta a řetězec J
·
Sacharidové složky imunoglobulinů
·
Imunoglobuliny: biologické
aktivity
·
Imunoglobuliny: variabilní
oblast
·
Idiotypy
·
Imunoglobuliny: prostorové
modely
Jaroslava
Vávrová
recenzoval Miroslav
Engliš
.