Iontové a vodní kanály jsou specializované
transmembránové proteiny, které transportují více nebo méně selektivně ionty a
vodu.
Iontové kanály jsou transmembránové proteiny umožňující prostup iontů membránou difuzí podle elektrochemického gradientu. Vazba signální látky na kanál jej rychle otevře a příslušné ionty takto otevřeným kanálem proniknou. Důsledkem je změna intracelulární koncentrace příslušného iontu. Iontové kanály je třeba odlišit od nosičových proteinů (permeasových proteinů). Zatímco transport zprostředkovaný permeasami pracuje s maximální rychlostí 105 iontů za sekundu, iontové kanály jsou schopné to provést 100 – 1000krát rychleji, a to bez potřeby energie.
Vodní kanály (aquaporiny)
jsou transmembránové proteiny pro selektivní transport vody přes lipidovou
dvojvrstvu. Selektivita pro vodu je vysoká, ale některé aquaporiny mohou
transportovat i další částice včetně částic s nábojem.
|
Kanály |
Příklady |
|
|
|
|
|
|
|
|
|
|
|
Kanál sodný epitelový (ENaC), podjednotky Kanál sodný epitelový, podjednotky |
|
Ostatní iontové kanály |
|
|
|
Principy funkce iontových kanálů
Příkladem je přenos hlavních buněčných iontů Na+, K+, Ca2+ a Cl- podle koncentračního spádu. Rozdílný koncentrační gradient vytváří rozdílný elektrochemický potenciál na různých stranách membrány, což umožňuje řadu biologických procesů jako je vedení elektrického impulsu axonem nervových buněk, iniciace kontrakce svalových buněk nebo navození sekrece exokrinních buněk pankreatu nebo žaludeční sliznice.
Schéma účinku přenašečového proteinu a kanálového proteinu
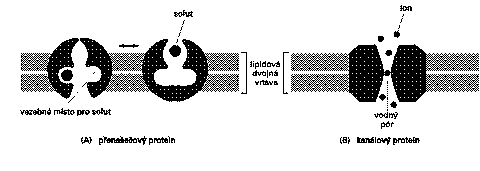
Iontové kanály jsou allosterické proteiny, jejichž konformace je regulována
různými typy podnětů. V přírodě se vyskytuje více než 75 různých iontových
kanálů a jejich seznam není ukončen. Podstatou všech jsou glykoproteiny, které
obsahují několik alfa-helikálních oblastí v transmembránové části a volné
hydrofilní řetězce pronikající jednak do cytoplasmy, jednak na druhém konci do
extracelulárního prostoru. Jako allosterický protein existuje iontový kanál ve
dvou nebo více konformacích jako je stav krátkého ale stabilního otevření a
zavření, což může být navozeno různými podněty:
·
změnou
v transmembránovém potenciálu (voltage-gated) nebo vazbou ligandu na
extracelulární oblast (ligand-gated receptor),
·
vazbou
neurotransmiteru (acetylcholin) na extracelulární oblast,
·
vazbou
interního mediátoru jako je nukleotid (intracelulární mesenger) nebo ion na
cytoplasmatickou oblast,
·
mechanický
podnět (tah) způsobený pohybem membrány napojenou na cytoskeletová filamenta
Napěťově řízené iontové kanály jsou
odpovědné za šíření elektrických impulsů na dlouhé vzdálenosti v nervech a
ve svalstvu. Nervový impuls tvoří vlna přechodné depolarizace membrány,
postupující podél nervové buňky, zvaná akční potenciál. Membránový potenciál vzniká už velmi nepatrnou změnou
koncentrace iontů na obou stranách membrány. Akční potenciál je důsledkem
přechodné změny permeability mebrány pro ionty Na+, za nimiž ve
zlomku milisekundy následuje přechodné zvýšení permeability pro K+.
Tyto změny permeability jsou možné proto, že membránu axonu prostupují napěťově
řízené kanály. Když nervový impuls dojde k danému okrsku buněčné membrány
neuronu, zvýšení membránového potenciálu vyvolá přechodné otevření kanálu pro
ionty Na+, které začnou difundovat do buňky rychlostí asi 6000
iontů/ms na 1 kanál. Když se depolarizační vlna posune dál, kanály Na+
se uzavřou a otevřou se kanály pro K+; tím se membrána
hyperpolarizuje. Následuje pak krátký úsek, v němž se kanály K+
uzavírají, a na membráně se ustaví zase klidový potenciál.
Existují neurotoxiny, které brání
funkci napěťově řízených kanálů. Jedním z nich je tetradotoxin, který blokuje
(uzavře) Na+-kanál a působí tak jako velice účinný paralytický jed.
Vyskytuje se v jednom druhu ryb (Tetraodon), známých zejména v Japonsku. Tyto
kanály blokuje také saxitonin, který mohou obsahovat mořští měkkýši (kupř.
ústřice), když se vyskytne tzv. červený příliv, v kterém jsou značně pomnoženy
mořské obrněnky (součást planktonu). Soudí se, že oba toxiny působí specificky
na aniontovou karboxylovou skupinu při ústí Na+- kanálu na vnější
straně buňky.
Ligandem řízené iontové kanály jsou
necitlivé vůči změnám napětí, ale otvírají se nekovalentní, reverzibilní vazbou
s chemickým ligandem. Umožňují kupř. rychlou komunikaci mezi různými
neurony nebo mezi neurony a svalem nebo žlázovými buňkami prostřednictvím
synapsí.
Existuje ještě další forma iontových
kanálů, a to mezerový spoj (gap junction), který umožňuje průchod iontů mezi
sousedními buňkami, aniž by vstoupily do extracelulárního prostoru.
Signalizace endothelinu a vliv na vazokonstrikci za účasti iontových
kanálů
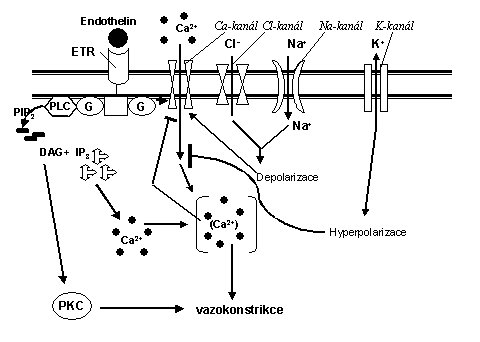
Obsazení endothelin-receptoru A
(ETR) endothelinem 1 navozuje aktivaci fosfolipasy C (PLC), která je klíčovou
molekulou pro vyvolání buněčné odpovědi: PLC štěpí
fosfatidylinositol-4,5-bisfosfát (PIP2) za vzniku diacylglycerolu
(DA( a D-myo-inositol-1,4,5-trisfosfosfátu (IP3). IP3
reguluje intracelulární Ca3+ vazbou na receptor na endoplasmatickém
retikulu, čímž stimuluje uvolnění Ca2+ z endoplasmatického retikula.
DAG se váže a aktivuje proteinkinasu
C (PKC). Zvýšení koncentrace Ca2+ v cytosolu vyvolává odpověď -
vazokonstrikci. Endothelin prostřednictvím svého receptoru otvírá kalciový
kanál, což přispívá ke zvýšení koncentrace nitrobuněčného Ca2+.
Další informace
Geneticky
podmíněné poruchy vnitř. prostředí
Jaroslav Masopust, Antonín Jabor